5大蛋白互作技术对比:原理、适用场景与实验避坑
时间:2026-09-15 阅读:102
做分子机制研究,蛋白-蛋白相互作用是绕不开的核心证据。很多课题会遇到这样的问题:Co-IP跑出阳性,审稿人却要求补充体外实验;酵母双杂交筛出一批候选,细胞水平却验证不到结果;弱互作、瞬时互作常规方法很难稳定捕获。
不同蛋白互作技术,分别对应细胞内复合物、体外直接结合、文库筛选、空间邻近以及原位可视化等不同维度,提供的互作信息并不相同。本文梳理五大常用技术:免疫共沉淀Co-IP、GST Pull-down、酵母双杂交Y2H、邻近生物素标记BioID/TurboID、双分子荧光互补BiFC,拆解原理、优缺点、适用场景以及实操避坑要点。
核心原理
在非变性条件下裂解细胞,尽量保留原有蛋白复合物。利用靶蛋白特异性抗体,将靶蛋白及在当前裂解条件下仍与其形成复合物的蛋白共同富集。洗脱后既可以用Western blot验证已知候选蛋白,也可以联合质谱(Co-IP-MS)筛选潜在互作分子。
关键点: Co-IP可以证明两个蛋白在细胞内存在于同一复合物中,但无法区分是直接物理结合,还是由第三个蛋白或其他分子介导的间接关联。
适用场景
1.在细胞环境中验证已知蛋白的互作关系;
2.联合质谱筛选靶蛋白的互作候选分子;
3.比较药物、刺激或基因突变前后蛋白复合物的变化。
优缺点
优点: 接近细胞内天然状态,可保留部分翻译后修饰;操作成熟;可检测多蛋白复合体。
缺点: 无法区分直接/间接结合;裂解和洗涤过程会丢失部分弱、瞬时互作;高度依赖抗体特异性,容易出现非特异性背景。
实操避坑
1.裂解液常选用NP-40等温和非变性去垢剂,避免强变性条件破坏复合物;
2.设置IgG同型对照和Input,条件允许可增加靶蛋白敲低/敲除对照;
3.样本避免反复冻融,加入蛋白酶抑制剂;涉及磷酸化依赖互作时加入磷酸酶抑制剂;
4.高背景时可对裂解上清进行预清除,减少非特异性吸附。
核心原理
将诱饵蛋白与GST标签融合表达纯化,固定在谷胱甘肽GSH磁珠或琼脂糖珠上,再与猎物蛋白孵育,洗涤后通过WB、染色或质谱检测被捕获的蛋白。
关键点: 当诱饵和猎物均为纯化蛋白时,Pull-down阳性可以有力支持二者具有直接结合能力;如果猎物来自细胞裂解液,则仍可能存在第三方蛋白或核酸介导的桥接,不能单独据此证明直接互作。
适用场景
1.使用纯化蛋白验证两种蛋白是否具有直接结合能力;
2.使用截短体定位参与互作的蛋白结构域;
3.比较突变前后蛋白结合能力。
优缺点
优点: 纯化蛋白体系可以排除大部分胞内复杂因素,适合直接结合和结构域验证。
缺点: 属于体外重组体系;如果使用原核表达蛋白,可能缺少真核翻译后修饰;蛋白浓度过高时可能出现非生理结合,蛋白折叠异常也可能导致假阴性。
实操避坑
1.设置GST空载蛋白阴性对照,排除标签和磁珠的非特异性吸附;
2.原核表达时优化诱导温度和IPTG浓度,尽量获得可溶性蛋白;
3.必要时调整N端/C端标签位置,减少空间位阻对折叠和结合的影响。
核心原理
将转录因子拆分为DNA结合域BD和转录激活域AD。诱饵蛋白融合BD,猎物蛋白融合AD;当两者在酵母细胞内形成互作时,BD和AD被拉近,恢复报告基因转录激活能力,使酵母在相应筛选条件下生长或产生报告信号。
分为点对点验证和cDNA文库筛选两种模式。
适用场景
1.无预设候选时筛选新的互作蛋白;
2.大规模点对点验证多组蛋白配对;
3.初步筛查适合经典Y2H体系的蛋白互作。
优缺点
优点: 通量高,可做文库筛选;不需要纯化蛋白,成本相对可控。
缺点: 实验发生在酵母细胞核内,部分依赖哺乳动物特异性翻译后修饰的互作可能无法正确重现;诱饵可能存在自激活或酵母毒性;经典Y2H不适合多数全长膜蛋白;筛选结果需要在其他体系继续验证。
实操避坑
1.正式筛库前进行诱饵自激活检测;
2.评估诱饵蛋白对酵母生长的影响;
3.自激活明显时可通过截短诱饵、调整表达强度或更换体系处理;
4.筛库阳性克隆建议再用Co-IP、Pull-down等方法验证。
核心原理
将靶蛋白与工程化生物素连接酶BioID或TurboID融合,在活细胞内表达。处于靶蛋白空间邻近范围内、能够接触活性生物素中间体的蛋白会被标记,随后使用链霉亲和素磁珠富集,并通过质谱鉴定邻近蛋白组。
关键点: 该方法不依赖复合物在裂解后继续保持稳定,因此适合记录弱、短暂或动态的空间邻近事件。但被标记的蛋白并不一定与靶蛋白发生直接物理结合。
适用场景
1.捕获弱、瞬时或动态的邻近蛋白网络;
2.亚细胞特定微环境蛋白组解析;
3.比较刺激处理前后的邻近蛋白变化。
优缺点
优点: 活细胞内完成标记,不受后续裂解过程影响;TurboID标记速度较快,适合时间分辨研究。
缺点: 反映空间邻近而非直接结合;需要构建融合载体;存在背景标记,对对照设置要求较高。
实操避坑
1.设置游离生物素连接酶或定位匹配的阴性对照;
2.测试N端/C端融合方式,确认标签不影响靶蛋白定位和功能;
3.控制生物素处理时间,平衡标记效率和背景噪音。
核心原理
将荧光蛋白拆分成两个非荧光片段,分别融合到两个待测蛋白上。当两个融合蛋白在细胞内进入足够近的空间距离时,荧光片段发生互补并形成可检测信号,从而观察互作或稳定近邻事件发生的位置。
适用场景
1.观察蛋白互作/近邻信号的亚细胞定位;
2.验证蛋白在细胞内存在关联;
3.观察突变对互作位置和信号强度的影响。
优缺点
优点: 可以直接观察信号发生在细胞核、细胞膜或细胞质等位置,也可通过荧光强度或阳性细胞比例进行相对比较。
缺点: 荧光互补形成后通常较难解离,而且荧光成熟存在时间延迟,因此不适合直接研究快速结合—解离动力学;荧光片段还可能发生自发互补。
实操避坑
1.设置阴性对照,条件允许可增加已知破坏互作的突变体;
2.测试不同标签融合方向;
3.控制两种融合蛋白表达水平,避免过表达增加假阳性;
4.BiFC阳性可作为细胞定位层面的证据,关键结论建议结合Co-IP或纯化蛋白Pull-down进一步验证。
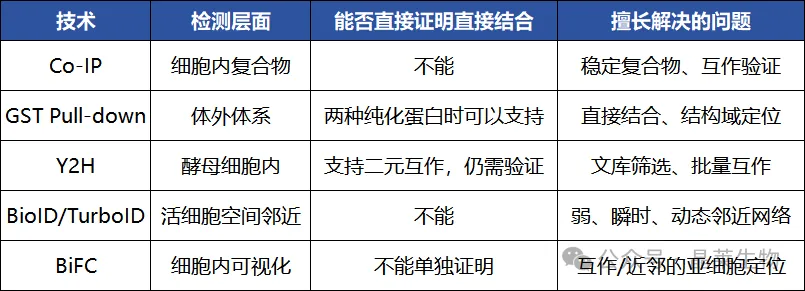
1. 验证已知一对蛋白是否互作
Co-IP可验证两者是否处于同一细胞内复合物;如果需要进一步证明直接结合,可增加两种纯化蛋白的Pull-down;BiFC用于补充细胞内定位信息。
2. 筛选未知互作蛋白
Co-IP-MS和BioID/TurboID-MS都可以进行候选筛选,但前者偏向稳定复合物,后者更适合邻近蛋白网络;Y2H适合文库初筛,阳性结果需要进一步回证。
3. 研究弱、瞬时相互作用
如果重点是筛查弱、短暂的空间邻近网络,TurboID更有优势;如果要证明某一对蛋白存在直接结合,还需要补充针对性的互作实验。
关于晶莱